タンパク質の構造とは?一次構造・二次構造をわかりやすく解説!(αヘリックス・βシート)
タンパク質は、筋肉や皮膚、酵素、抗体など、体を形づくり働かせるために欠かせない物質です。
同じタンパク質でも、アミノ酸の並び方や折りたたまれ方が異なると、果たす役割も大きく変わります。
とくに一次構造と二次構造は、複雑な立体構造を理解するための出発点です。
この記事では、タンパク質構造の基本、αヘリックスとβシートの特徴、構造が崩れる仕組みまでを順に解説します。
タンパク質の構造と一次構造・二次構造の基本
それではまずタンパク質の構造について解説していきます。
アミノ酸がつながるタンパク質の基本単位
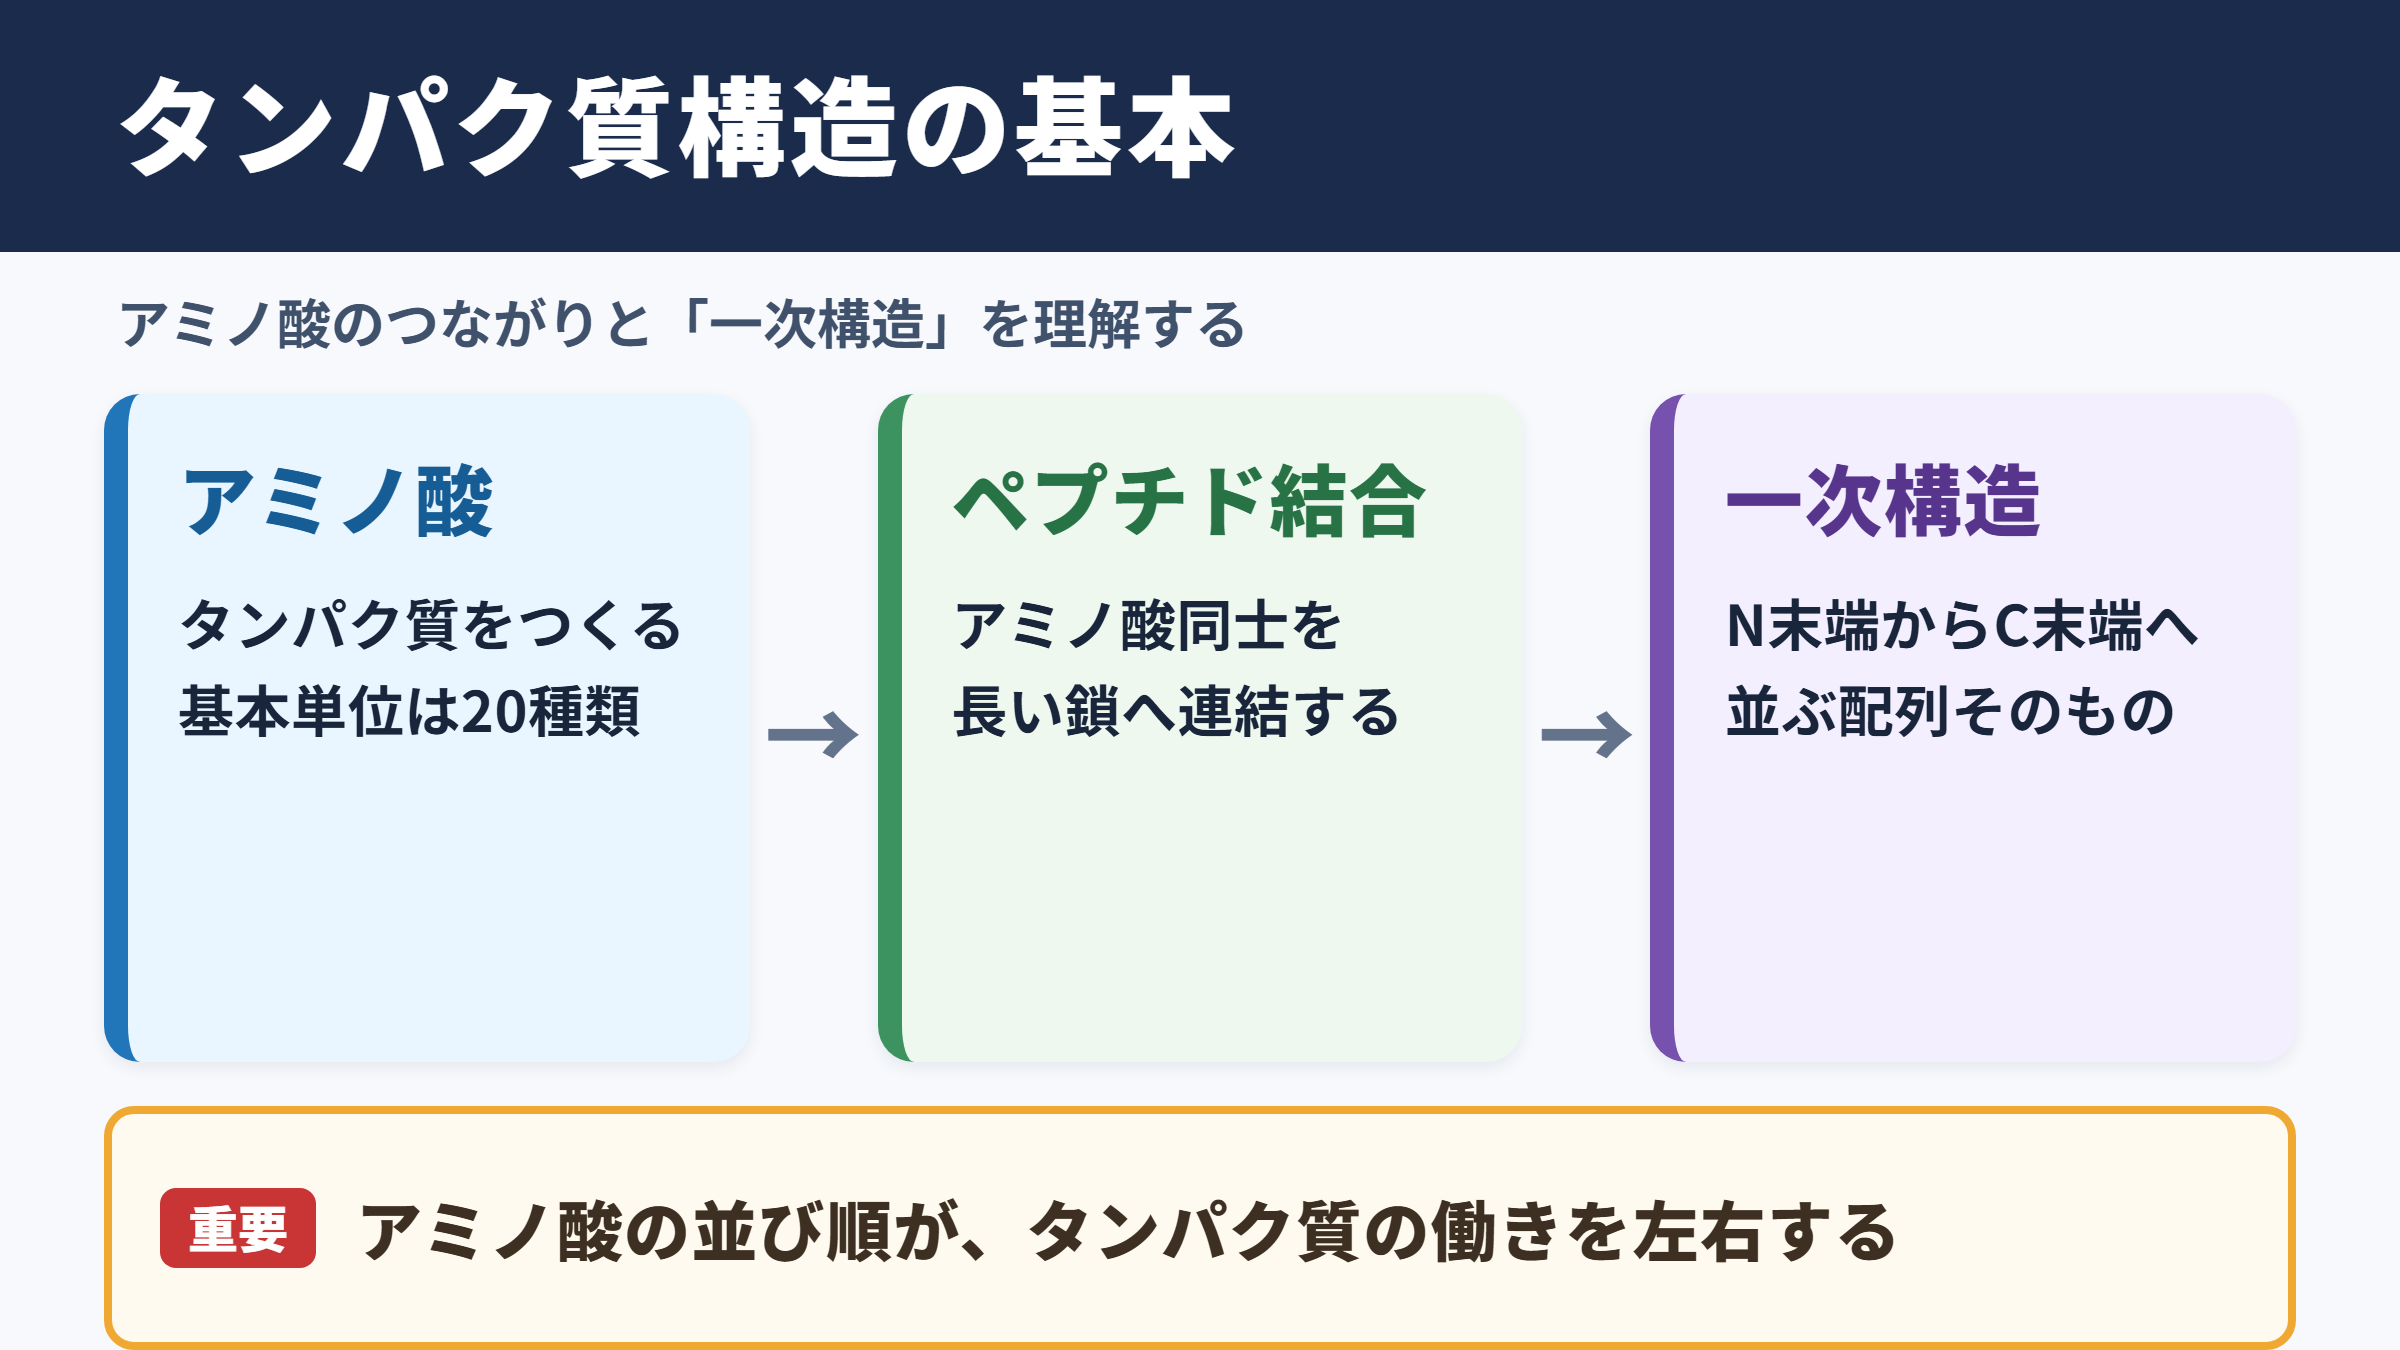
タンパク質は、アミノ酸がペプチド結合によって長くつながった高分子です。
アミノ酸は、アミノ基、カルボキシ基、水素原子、側鎖を持つ有機化合物です。
タンパク質をつくる標準的なアミノ酸は20種類あり、側鎖の性質がそれぞれ異なります。
たとえばグリシンは側鎖が小さく、アラニンはメチル基を持ちます。リシンの側鎖は水中で正に帯電しやすい性質があります。
アミノ酸同士は、一方のカルボキシ基ともう一方のアミノ基が反応してできるペプチド結合で連結します。
この鎖には、アミノ基側のN末端とカルボキシ基側のC末端という向きがあります。
細胞内では遺伝子の情報をもとに、リボソームがアミノ酸を決められた順序でつなぎ合わせます。
身近な食品に含まれるタンパク質も、もとはこのようなアミノ酸の鎖です。卵白の主成分や牛乳中のカゼインも、異なるアミノ酸配列を持っています。
タンパク質は単なるアミノ酸の集まりではありません。
アミノ酸の種類、数、並び順、折りたたまれ方がそろって初めて固有の働きを示します。
一次構造としてのアミノ酸配列
一次構造とは、N末端からC末端へ並ぶアミノ酸の順序そのものです。
一次構造は、タンパク質の設計図にあたる最も基本的な情報です。
配列中のアミノ酸を1つ別のものに置き換えるだけでも、立体構造や働きが変化する場合があります。
たとえばヘモグロビンは赤血球で酸素を運ぶタンパク質です。特定のアミノ酸置換は、赤血球の形や酸素運搬に影響することがあります。
一次構造を表すときは、アミノ酸を1文字表記または3文字表記でN末端側から記します。
ペプチド結合は比較的安定な共有結合なので、温度変化だけでは通常切れません。
一方で、強い酸や強い塩基、特定の分解酵素は、ペプチド結合の切断に関わります。
一次構造が保たれていても、後で説明する二次構造や高次構造が崩れることはあります。
つまり、加熱した卵白が白く固まる現象は、主にアミノ酸配列がなくなる変化ではなく、折りたたみ方が変わる現象として考えられます。
一次構造の表記例
グリシン、アラニン、セリンの順に並ぶ短いペプチドは、N末端側から Gly Ala Ser と表せます。
並び順が Gly Ser Ala に変われば、含まれるアミノ酸の種類が同じでも別の一次構造です。
構造の階層と働きの関係
タンパク質の構造は、一次構造、二次構造、三次構造、四次構造という階層で整理されます。
一次構造はアミノ酸配列、二次構造は鎖の局所的な折りたたみです。
三次構造は1本のポリペプチド鎖全体がつくる立体的な形を指します。
四次構造は、複数のポリペプチド鎖が組み合わさってできる構造です。ヘモグロビンのように複数のサブユニットからなるタンパク質が代表例です。
この分類は、構造を別々の部品として切り離すためのものではありません。
実際には、一次構造に含まれる側鎖の性質が、二次構造や三次構造をつくりやすさに影響します。
水を好む側鎖、水を避けやすい側鎖、正負の電荷を持つ側鎖などが、立体構造の安定性に関わります。
酵素が特定の物質だけに反応しやすいのも、立体構造によって反応相手が合う場所ができるためです。
構造を階層ごとに見ると、遺伝子の変化から体内での働きまでを結び付けて理解しやすくなります。
二次構造を支える水素結合の仕組み
続いては二次構造を支える結合の仕組みを確認していきます。
主鎖の水素結合と局所的な折りたたみ
二次構造は、主にポリペプチド主鎖どうしの水素結合によって安定化された局所構造です。
ペプチド結合には、酸素原子を含むカルボニル基と、水素を持つアミド基があります。
カルボニル基の酸素と、別の場所にあるアミド基の水素の間には水素結合が形成されます。
この水素結合が規則的に繰り返されることで、鎖の一部は一定の形に保たれます。
重要なのは、二次構造を直接支える中心が側鎖ではなく主鎖である点です。
ただし側鎖の大きさや電荷、水とのなじみやすさは、その形を取りやすいかどうかに影響します。
たとえばかさ高い側鎖が密集すると、らせん状の構造がつくりにくくなる場合があります。反対に小さな側鎖が多い領域では、別の曲がり方が生じやすいこともあります。
水素結合は共有結合より弱い結合ですが、数多く並ぶことで構造全体の安定化に役立ちます。
タンパク質の形は1本の強い結合だけで決まるのではなく、多数の弱い相互作用の組み合わせで保たれています。
二次構造では、主鎖のカルボニル基とアミド基の水素結合が基本になります。
側鎖は水素結合の並び方を決める主役ではありませんが、構造の安定性や形成しやすさに深く関わります。
αヘリックスのらせん構造
αヘリックスは、ポリペプチド鎖がらせん状に巻かれた代表的な二次構造です。
αヘリックスでは、鎖の進行方向に沿って比較的規則正しい水素結合が並びます。
このため、全体としてばねやコイルのような細長い形に見えます。
髪や爪に多いケラチンには、αヘリックスを含む構造が見られます。髪を引っ張ったときにある程度しなやかに伸びる性質は、タンパク質の階層構造とも関係しています。
αヘリックスの側鎖は、らせんの外側へ向かって突き出します。
そのため、側鎖どうしの反発や引き合い、水分子との関係によって、らせんが安定するかどうかが変わります。
プロリンは鎖の形に制約を与えやすく、αヘリックスの途中で曲がりをつくることがあります。
また、同じ種類のアミノ酸が連続していても、周囲の配列や溶液の条件によって、らせんの安定性は一様ではありません。
αヘリックスを覚える際は、主鎖内の水素結合で固定された、側鎖が外向きのらせんと捉えると整理しやすいでしょう。
αヘリックスの見方
主鎖はらせんの内側をたどるように配置されます。
側鎖はらせんの外側に向くため、周囲の水やほかの分子との相互作用に参加しやすくなります。
βシートの並行配置と逆平行配置
βシートは、伸びたポリペプチド鎖どうしが水素結合で横に並ぶ二次構造です。
βシートを構成する1本ずつの鎖は、βストランドと呼ばれます。
複数のβストランドが並ぶと、紙を折ったような波打つシート状の構造になります。
隣り合う鎖が同じ向きに進む配置は平行βシートです。向きが反対になる配置は逆平行βシートと呼ばれます。
どちらの場合も、主鎖の間に水素結合がつくられ、面状の構造が保たれます。
βシートでは側鎖がシートの上下に交互に突き出します。そのため、一方の面が水となじみやすく、もう一方の面が水を避けやすい性質を持つ場合があります。
絹の主成分であるフィブロインには、βシートに関連する規則的な構造が見られます。
丈夫さやしなやかさは、単純にβシートの有無だけで決まるわけではありません。分子の並び方や結晶性、ほかの構造との組み合わせも重要です。
αヘリックスがらせんとして理解しやすいのに対し、βシートは複数の伸びた部分が横に並ぶ構造として考えると区別できます。
αヘリックスとβシートの特徴比較
続いてはαヘリックスとβシートの違いを確認していきます。
形状と水素結合の向き
αヘリックスは1本の鎖の中で水素結合をつくり、βシートは離れた鎖の部分どうしでも水素結合をつくります。
両者はともに二次構造ですが、見た目と水素結合の並び方が大きく異なります。
αヘリックスでは、鎖が連続的に巻かれてらせん形になります。
βシートでは、鎖が伸びた状態に近い部分が折り返されながら並び、シート状の面をつくります。
タンパク質の中には、αヘリックスだけからなるものもあれば、βシートを多く含むものもあります。
さらに、多くのタンパク質では両方の構造が組み合わされ、立体的な骨組みがつくられます。
構造を図で読むときは、αヘリックスが円筒やらせん、βシートが矢印の帯として描かれることがあります。
矢印の向きは、通常、ポリペプチド鎖のN末端からC末端への向きを表します。
図の記号を知っておくと、教科書や研究資料でタンパク質の構造を把握しやすくなるでしょう。
| 比較項目 | αヘリックス | βシート |
|---|---|---|
| 基本形状 | らせん状 | 波打つシート状 |
| 主な水素結合 | 同じ鎖の近い部分どうし | 並んだストランドどうし |
| 側鎖の向き | らせんの外側 | シートの上下に交互 |
| 鎖の配置 | 連続した鎖が巻かれる | 平行、逆平行に並ぶ |
| 図での表現 | 円筒、らせん | 矢印の帯 |
表の違いは、構造を固定的な型として覚えるためではなく、水素結合の位置を理解するために役立ちます。
実際のタンパク質では、構造の境目に曲がりや短い不規則部分が入り、機能に必要な形がつくられます。
アミノ酸配列と形成されやすさ
アミノ酸配列は、どの場所にαヘリックスやβシートが形成されやすいかを左右します。
二次構造は配列から一意に決まる単純な暗号ではなく、周囲の環境や立体構造全体の影響も受けます。
αヘリックスでは、らせんを妨げにくい側鎖の並びが安定化に寄与することがあります。
βシートでは、ストランドの表裏に現れる側鎖の性質が、内部に埋もれる面や水に接する面の形成に関係します。
プロリンやグリシンは、特定の場所で鎖の曲がりや柔軟性に関わりやすいアミノ酸として知られています。
ただし、あるアミノ酸があれば必ず特定の構造になるという理解は正確ではありません。
同じ配列の一部でも、周辺のアミノ酸やほかの分子との相互作用によって、取る形が変わることがあります。
タンパク質は細胞内でつくられる途中から折りたたまれ始め、周囲の水や補助タンパク質の影響も受けます。
配列を読むときは、1つのアミノ酸だけを見て結論を急がず、連続する領域と全体の文脈を見る姿勢が大切です。
アミノ酸配列は構造形成の土台です。
しかし実際の折りたたみには、水素結合、疎水性相互作用、電荷、周囲の環境など複数の要因が関わります。
タンパク質中での役割と観察方法
αヘリックスとβシートは、タンパク質の形を支える骨格として働きます。
αヘリックスは、細長い部分や膜を貫く部分に見られることがあります。
細胞膜は脂質二重層からできているため、水を避けやすい側鎖を持つαヘリックスが膜内部に入り込む例があります。
βシートは、複数の鎖が集まって比較的広い面をつくりやすい構造です。
酵素や抗体などでは、βシートを含む領域がほかの構造と組み合わさり、分子を認識する表面や安定した骨格を形成します。
これらの構造は肉眼では見えず、X線結晶構造解析、核磁気共鳴分光法、クライオ電子顕微鏡などで調べられます。
得られた情報は立体構造モデルとして表され、どの位置にらせんやシートがあるかを確認できます。
医薬品開発では、標的タンパク質の立体構造を手掛かりにして、結合しやすい分子を考えることがあります。
構造の知識は生物の授業だけでなく、病気の研究や薬の設計にもつながる基礎になります。
タンパク質構造の変性と働きの変化
続いてはタンパク質構造が変化する条件を確認していきます。
熱とpHによる変性
タンパク質の変性とは、一次構造を保ったまま二次構造や三次構造などが変化し、本来の働きが失われる現象です。
タンパク質の立体構造は、水素結合や疎水性相互作用、イオン結合など、多くの相互作用で支えられています。
加熱すると分子の運動が大きくなり、これらの相互作用のバランスが崩れることがあります。
卵を加熱したときに透明な卵白が白く固まる現象は、変性と凝集の代表的な例です。
強い酸性や強いアルカリ性も、側鎖の電荷状態を変え、構造の安定性に影響します。
レモン汁を加えた牛乳で成分が分かれる現象にも、酸性条件によるタンパク質の性質変化が関わります。
変性したタンパク質は、条件を元に戻しても必ずしも元の構造に戻るわけではありません。
一方で、比較的穏やかな変化なら、条件が整ったときに再び構造を取り戻す場合もあります。
変性と分解は同じ意味ではなく、変性ではペプチド結合が保たれていることが多い点を区別しましょう。
変性と分解の違い
変性では、アミノ酸配列が大きく変わらないまま立体構造や働きが変化します。
分解では、ペプチド結合が切断され、より短いペプチドやアミノ酸へ変わります。
変性後の凝集と食品での身近な例
変性したタンパク質は、表面に隠れていた部分が外側に現れ、ほかの分子と結び付きやすくなることがあります。
凝集は、変性して形が変わったタンパク質どうしが集まり、大きなかたまりをつくる現象です。
ゆで卵の卵白が固まるのは、熱で構造が変化したタンパク質が集まるためです。
肉を加熱すると色や食感が変わるのも、筋肉中のタンパク質が熱の影響を受けるためです。
ただし、加熱による変化はタンパク質だけで決まりません。
水分、脂質、糖、塩、加熱時間なども、最終的な硬さや口当たりに影響します。
ヨーグルトやチーズの製造では、酸や酵素によって乳タンパク質の状態を変え、固まりやすくする工程が利用されています。
食品で起こる変化を見ると、タンパク質構造が身近な性質と結び付いていることが実感できます。
一方で、変性したからといって栄養としてのアミノ酸が直ちに消えるわけではありません。
調理による変化と、消化で酵素がペプチド結合を切る過程は、別の現象として理解することが重要です。
| 身近な場面 | 主な条件 | 構造上の変化 | 観察できる変化 |
|---|---|---|---|
| ゆで卵 | 加熱 | 立体構造の変化、凝集 | 卵白が白く固まる |
| 焼いた肉 | 加熱 | 筋肉タンパク質の変性 | 色、硬さ、保水性が変化する |
| ヨーグルト | 酸性化 | 乳タンパク質の状態変化 | とろみ、凝集が生じる |
| 酢を加えた牛乳 | pHの低下 | 電荷のバランスが変化する | 成分が分かれやすくなる |
食品の見た目の変化は、タンパク質の構造変化を考える手掛かりになります。
ただし食品は多くの成分を含むため、単一のタンパク質だけの性質として単純化しすぎないようにしましょう。
構造異常と病気研究の基礎
タンパク質が正しく折りたためない状態は、細胞に負担を与えることがあります。
細胞内には、折りたたみを助けるシャペロンと呼ばれるタンパク質群があります。
シャペロンは、できたばかりのポリペプチド鎖が不適切に集まることを防ぎ、適切な構造形成を助けます。
それでも異常な構造を持つタンパク質が生じた場合、細胞は分解する仕組みを使って量を調節します。
一部の病気では、特定のタンパク質が異常に集まりやすいことが研究されています。
このような研究では、一次構造の変化、二次構造の偏り、分子どうしの結合などを多角的に調べます。
βシートに富む繊維状の集合体が注目される例もありますが、すべてのβシートが病気に直結するわけではありません。
正常なタンパク質にもβシートは広く存在し、生命活動に必要な役割を果たしています。
構造異常を理解するには、正常な構造と比較しながら、どの条件で分子の性質が変わるかを見る必要があります。
基礎的な二次構造の知識は、生命科学や医学の研究内容を読み解く土台になるでしょう。
| 構造の段階 | 主な内容 | 変化した場合の影響例 |
|---|---|---|
| 一次構造 | アミノ酸配列 | 立体構造や機能の変化につながる |
| 二次構造 | αヘリックス、βシートなど | 局所的な安定性や骨格が変わる |
| 三次構造 | 1本の鎖全体の立体形状 | 結合部位や反応部位が変わる |
| 四次構造 | 複数サブユニットの集合 | 協調的な働きに影響する |
タンパク質の構造と一次構造・二次構造のまとめ
タンパク質はアミノ酸がペプチド結合でつながった分子であり、一次構造はそのアミノ酸配列を指します。
二次構造は主鎖間の水素結合によって生まれる局所的な折りたたみです。
αヘリックスは1本の鎖がらせん状に巻かれた構造で、側鎖は外側に向きます。
βシートは伸びた鎖の部分が横に並ぶ構造で、平行配置と逆平行配置があります。
どちらもタンパク質の立体構造を支え、酵素反応、物質の認識、細胞内での働きに関わります。
熱やpHの変化によって立体構造が崩れる現象は変性であり、食品の調理でも観察できます。
一次構造、二次構造、三次構造、四次構造を順に整理すると、複雑なタンパク質の働きも理解しやすくなります。
教科書の構造図を見るときは、水素結合の位置と側鎖の向きに注目して、αヘリックスとβシートを見分けてみてください。
コメント